狂犬病毒為何只攻擊神經?從皰疹病毒偷來的
狂犬病為什麼那麼可怕?為什麼一旦發病,幾乎是 100% 致死?最簡短的回答,藏在一件奇怪的事實裏:狂犬病毒(RABV)不會隨便感染身體的哪個部位——它只攻擊神經。而這個故事裏最讓人不寒而慄的部分,是一項基於病毒演化的假說:這份「只攻擊神經」的本事,可能根本不是狂犬病毒自己發明的。它可能是從皰疹病毒那裏「偷」來的。甚至,把刀再轉過來——皰疹病毒,說不定才是先偷的那一個。
一個「臭名昭著」的病毒目
RABV 屬於單股負鏈病毒目 Mononegavirales(不分節段的負鏈 RNA 病毒,簡稱 NNSV)。這個目經常上新聞,而且多半沒什麼好事。感染人的種類包括尼帕、亨德拉、麻疹、副流感 1、2、3、4 型、呼吸道合胞病毒、偏肺病毒、伊波拉(5 個種)、馬爾堡、狂犬、腮腺炎。
而在這一大群裏,狂犬格外特別:它專門感染神經,主要通過抓傷、咬傷傳播,感染後沿神經潛伏上行,一旦侵犯中樞神經,病死率極高。它的組織偏好和病程,和同目其他成員比起來,非常奇特。
融合蛋白:病毒開門的工具
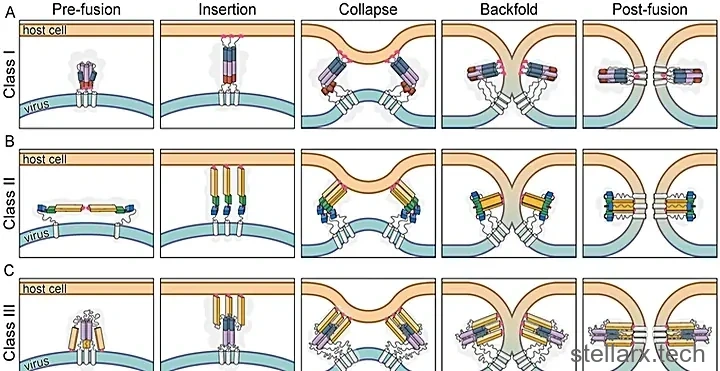
病毒偏好感染什麼組織細胞,與膜融合蛋白(FP)有關。FP 分佈在病毒表面,引導病毒膜與細胞膜發生融合;一旦膜融合,病毒的物質進入細胞,感染就開始了。目前一共發現 3 種廣泛分佈的 FP,存在於不同病毒,各自代表 3 種獨特的結構,以及各自的變構-膜融合機制。
絕大部分呼吸道病毒的 FP 都是 Class I;Mononegavirales 的 Class I FP 最為典型,其中一些已被深入研究、解出結構。還有幾個科——Artoviridae、Lispiviridae、Xinmoviridae、Mymonaviridae——在 AlphaFold DB 中也被預測為 Class I FP。簡言之,Mononegavirales 的 Class I FP 構成一個單系群,伴隨全目一同發生演化輻射,基本上就是 NNSV 的預設配置。
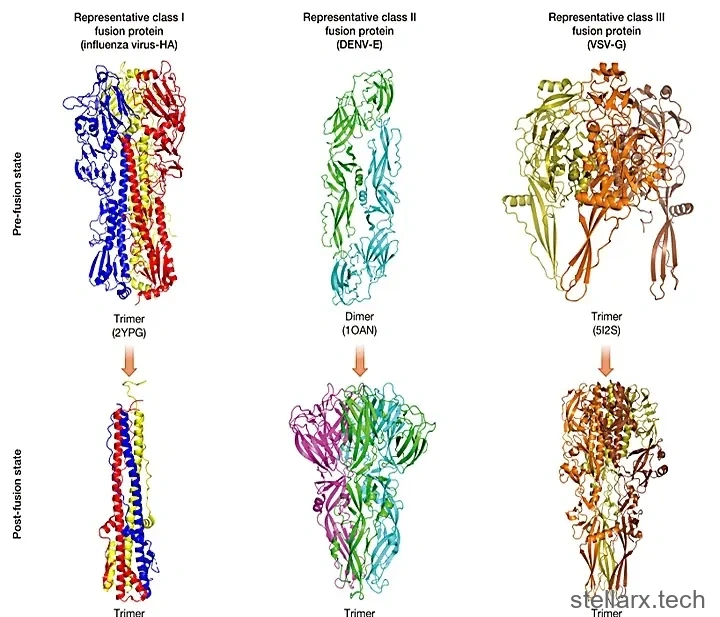
病毒的膜融合本身分五步——融合前(Pre)、插入(Insertion)、塌陷(Collapse)、折返(Backfold)、融合後(Post)——第三類融合蛋白走的是同一條路,只是沿途摺疊的方式不同。
狂犬與 VSV 是「叛徒」
但狂犬、水皰性口炎病毒(VSV)所在的彈狀病毒科 Rhabdoviridae,加上博爾納病毒科 Bornaviridae,非常特別。作為 NNSV,它們的醣蛋白 G 卻屬於 Class III,與皰疹病毒表面的醣蛋白 gpB 在結構和膜融合機制上相似,存在同源關係,而與 NNSV 預設的 Class I FP 在演化上無關。
相應地,這兩個科的組織偏好與其他 NNSV 大相徑庭:都是高度專性嗜神經的病毒。
這種反常的譜系斷裂,似乎只能用水平基因轉移(HGT)來解釋:彈狀病毒的祖先在演化過程中,意外地從其他病毒那裏獲得了 Class III FP 基因,並替換掉自己的 Class I FP。
而皰疹病毒正是 Class III FP 的一個大本營,又有許多皰疹病毒同樣表現出高度特異的神經偏好(下文詳述)——兩種融合機器極其相似、又都執著於神經的病毒,難道真的只是巧合?
一場「偷學」
於是,一個奇妙的故事誕生了:某次,兩種病毒感染了同一個細胞,RABV 的祖先從單純皰疹病毒(HSV)的祖先那裏「偷」來了 Class III FP,並「丟棄」了自己的 Class I FP。
這個事件發生的時間可能極其久遠:兩者的蛋白序列相似度太低,如果不看三維結構,幾乎無法比對出來。
病毒在細胞裏「連吃帶拿」其實很常見,也算是病毒演化的驅動因素之一。如果兩種病毒感染同一個細胞,它們會互相對抗,還是互相「偷學」對方的手藝?狂犬病毒似乎提供了一個範本——它的組織嗜性甚至都發生了巨大的改變(當然,不完全一定與 Class III FP 有關)。可見特定的病毒組件,對應著特定的生態位。
神經嗜性的演化,與 Class III FP 的獲得
組織嗜性(病毒在人體內具體感染什麼組織和細胞)之所以與表面醣蛋白關聯,是因為後者決定細胞表面受體的選擇。遠緣病毒之間的組織嗜性相似性,最好慎重審視:病毒表面醣蛋白演化極快,除非能嚴格排除趨同。
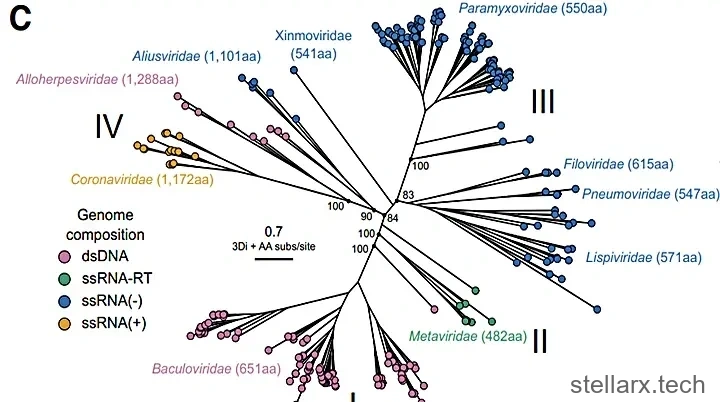
彈狀病毒科是一個大科,宿主譜非常寬(下文詳述),感染動物的種類裏有嗜神經的,也有不嗜神經的。實際上,彈狀病毒是已知 Mononegavirales 中最深的分支之一(見下圖),最早可能起源於昆蟲。
與 Mononegavirales 相近的其他 NSV 譜系及其編碼 FP 的情況如下:
負鏈 RNA 病毒門 Negarnaviricota——單病毒亞門 Haploviricotina——共 4 綱:
春秋病毒綱 Chunqiuviricetes——穆病毒目 Muvirales——秦病毒科 Qinviridae——嬴病毒屬 Yingvirus。2 節段,未識別到 FP,可能無包膜。宿主:甲殼類、昆蟲、腹足類、線蟲等。
米爾涅病毒綱 Milneviricetes——蛇形病毒目 Naedrevirales——蛇形病毒科 Aspiviridae。4 節段,無包膜。宿主:樹木、灌木、蔬菜以及球莖或球莖狀觀賞植物,含單子葉與雙子葉。
允常病毒綱 Yunchangviricetes——勾踐病毒目 Goujianvirales——越病毒科 Yueviridae——於越病毒屬 Yuyuevirus。2 節段,未識別到 FP,可能無包膜。宿主:鰓足綱、十足目和等足目甲殼動物;雙翅目和纓翅目昆蟲;石松亞綱和真蕨綱植物、各種大型水生植物及絲狀藻類。
單荊病毒綱 Monjiviricetes——2 目。單股負鏈病毒目 Mononegavirales,以及荊楚病毒目 Jingchuvirales——後者共 5 科:
殊異病毒科 Aliusviridae——2 屬。沙洋蠅病毒 1(SyFV-1)的 GP 預測為 Class I FP。
楚病毒科 Chuviridae——16 屬。塔城蜱病毒 4(TcTV-4)的 GP 預測為 Class III FP。
黃昏病毒科 Crepuscuviridae——廣翅目楚相關病毒 119(MCrV119)的 GP 預測為 Class I。
多足病毒科 Myriaviridae——湖北多足類病毒 8(HbMV8)的 GP 預測為 Class I。
浮游病毒科 Natareviridae——溫州蟹病毒 3(WzCVV3)的 GP 在 AlphaFold DB 中預測置信度低,有人認為屬於某種 Class II / Class III 的混合摺疊。
結論:Class I 和 Class III 在 Mononegavirales 以外的近緣類群中同時存在,結合 RdRP 演化樹,似乎在演化歷史上,Class III FP 多次進入 NNSV 譜系。但目前的資料很不充足,需要更多細緻研究。
下圖是根據 L 蛋白 PRNTase(樣)結構域的蛋白序列建立的演化樹,顯示科級演化關係:節肢類病毒科 Artoviridae、博爾納病毒科 Bornaviridae(Class III FP,嚴格神經嗜性,在羊、馬引起腦炎,極少感染人)、新城蚊病毒科 Xinmoviridae、尼亞米病毒科 Nyamiviridae、彈狀病毒科 Rhabdoviridae(Class III FP:狂犬、VSV)、李氏蜘蛛病毒科 Lispiviridae、副黏病毒科 Paramyxoviridae(副流感、亨尼帕、新城疫、麻疹、腮腺炎)、日光病毒科 Sunviridae、肺病毒科 Pneumoviridae(呼吸道合胞、偏肺)、絲狀病毒科 Filoviridae(伊波拉、馬爾堡)、荊楚病毒目 Jingchuvirales、楚病毒科 Chuviridae。
彈狀病毒這邊
本科分 4 亞科(α-δ)、64 屬、615 種,占 Mononegavirales 的 2/3。大部分成員(包括感染植物的)擁有 Class III 的 GP 蛋白,是 Class III GP 多樣性最高的分支。
RABV 所在的呂薩病毒屬 Lyssavirus、VSV 所在的水皰病毒屬 Vesiculovirus 都屬 α 亞科,多樣性最高;β 亞科宿主為植物及媒介昆蟲,有些種類沒有 GP,可能為裸病毒;γ 亞科宿主為魚和軟體類;δ 亞科宿主為甲殼類、蛛形綱和昆蟲。
本科許多成員是蟲媒病毒,宿主譜表現在媒介與媒介宿主之間跳躍。比如 β 亞科就被認為起源於媒介昆蟲,之後才傳播到植物宿主。所以現生彈狀病毒的宿主譜,並不完全歸因於嚴格的宿主協同演化。
呂薩病毒屬和 Vesiculovirus 在演化上的距離其實比較遠。在其他報道中,α 亞科許多屬都在各自宿主中不同程度地表現出神經嗜性,包括:兩棲類呂薩病毒屬 Amplyvirus(宿主兩棲動物,比如樹蛙)、暫時熱病毒屬 Ephemerovirus(牛暫時熱病毒 BEFV)、勒丹特病毒屬 Ledantevirus(蝙蝠為野外儲庫,有感染人病例並出現神經系統症狀)、爬行類呂薩病毒屬 Replylivirus、σ 病毒屬 Sigmavirus(宿主果蠅)等。
此外,γ 亞科下的 NV 編碼彈狀病毒屬 Novirhabdovirus 是漁業病害:傳染性造血壞死病毒(IHNV,宿主鮭魚)、病毒性出血性敗血症病毒(VHSV,宿主鮭、鱒、鱈、鮃、狗魚等)都報道有神經駐留、神經與行為症狀。
結論:許多跡象表明,神經嗜性在彈狀病毒中演化的時間可能極早。然而目前的分子鐘技術手段,很難用於遠古 RNA 病毒演化史研究,無法追溯確切時間。
皰疹病毒這邊
皰疹病毒的宿主包括軟體動物(軟體類皰疹病毒科 Malacoherpesviridae)、魚和兩棲類(異皰疹病毒科 Alloherpesviridae)、爬行類、鳥類與獸類(正皰疹病毒科 Orthoherpesviridae)。
先看正皰疹病毒科:
感染人的 α-皰疹病毒亞科成員:HSV-1、HSV-2、水痘-帶狀皰疹病毒(VZV)。它們能以不同方式侵入並潛伏於感覺神經節,常在免疫力低下或有刺激物時發作引起疾病。
感染鳥獸的成員:豬偽狂犬病毒(PRV)、雞馬立克病毒(MDV,神經型可廣泛侵犯外周與中樞神經)、雞傳染性喉氣管炎病毒(ILTV,能在三叉神經節建立潛伏感染)、猴 B 病毒(BV,人被攜帶病毒的獼猴咬傷抓傷或大量接觸體液、排泄物後可感染,病毒一旦上行侵犯中樞神經,病死率極高)、貓皰疹病毒(FeHV)、馬皰疹病毒(EHV-1、EHV-4)、牛皰疹病毒(BHV-5)。它們不同程度報道有感覺神經節潛伏乃至嚴重中樞神經系統症狀;而 BHV-1 似乎不太嗜神經,神經症狀報道較少。
感染爬行類的成員:陸龜皰疹病毒(TeHV-1、2、3、4)、海龜皰疹病毒(ChHV-5、6)、蠵龜生殖-呼吸道皰疹病毒(LGRV)、蠵龜口皮皰疹病毒(LOCV)、鬣蜥皰疹病毒(IgHV-1)、巨蜥皰疹病毒(VHV-1、3)、鱷皰疹病毒(CrHV-1、2、3)、板蜥皰疹病毒 1、2、3、毒蜥皰疹病毒(HeHV-1)、眼鏡蛇皰疹病毒-1、綠蛇皰疹病毒-1。從病變表型看,總體上大多集中於內臟、淋巴系統、生殖道、呼吸道受累,神經系統症狀偶有報道,但很難證明其具有嗜神經性;TeHV-3 有報道發現明確的神經節潛伏。
β-皰疹病毒亞科:比如人巨細胞病毒(HCMV),感染多種內臟器官,可潛伏於內皮細胞、髓系祖細胞、單核細胞等。
γ-皰疹病毒亞科:比如 EB 病毒(EBV)和卡波西肉瘤相關皰疹病毒(KSHV),主要表現為內皮嗜性和淋巴嗜性(主要是 B 細胞;EBV 還有報道感染 T、NK)。
其他兩個科:異皰疹病毒科主要為上皮嗜性——錦鯉皰疹病毒(KHV/CyHV3)的研究發現,鰓、腎和脾臟中病毒濃度最高,腦組織中也能夠檢出,但沒有發現其在神經組織潛伏。軟體類皰疹病毒科資料有限——以牡蠣皰疹病毒 1 型(OsHV-1)為例,病毒載量主要檢出於內臟和鰓。
皰疹病毒的演化史
根據分子鐘研究,α-γ 皰疹病毒亞科最後共同祖先(TMRCA)距今 180 Mya - 210 Mya(早侏羅世),這個時間晚於哺乳類(合弓綱 Synapsida)和爬-鳥(蜥形綱 Sauropsida/雙孔亞綱 Diapsida)分支的時間(晚石炭世,約 314 Mya)。
可以觀察到,β 和 γ 亞科僅發現於獸類,而 α 皰疹病毒遍布兩棲、爬行、獸類——看起來 α 是最早分支的古老型,β 和 γ 的分支發生在合弓綱內部,最後跨種傳播到主龍。
然而事實是:α 皰疹病毒中唯二感染哺乳動物的屬——水痘皰疹病毒屬 Varicellovirus(VZV)和單純皰疹病毒屬 Simplexvirus(HSV-1、HSV-2)——其實非常年輕,被認為是在晚白堊世至古近紀之間的某個時間,從鳥類跨種傳播給獸類而形成的。
現有的數據與現生皰疹病毒的演化樹和宿主譜存在巨大的衝突,所以還有一種觀點:分支時間可追溯到羊膜動物祖先甚至更早,隨後 α 亞科在主龍類中演化、β 和 γ 亞科在合弓綱中演化——這就把 TMRCA 延長了幾乎一倍(解釋是病毒演化速度的不均勻性),一個具體估計是 374 Mya - 420 Mya(泥盆紀)。然而由於非鳥恐龍和合弓綱幹群的滅絕,這些問題可能很難解釋清楚。
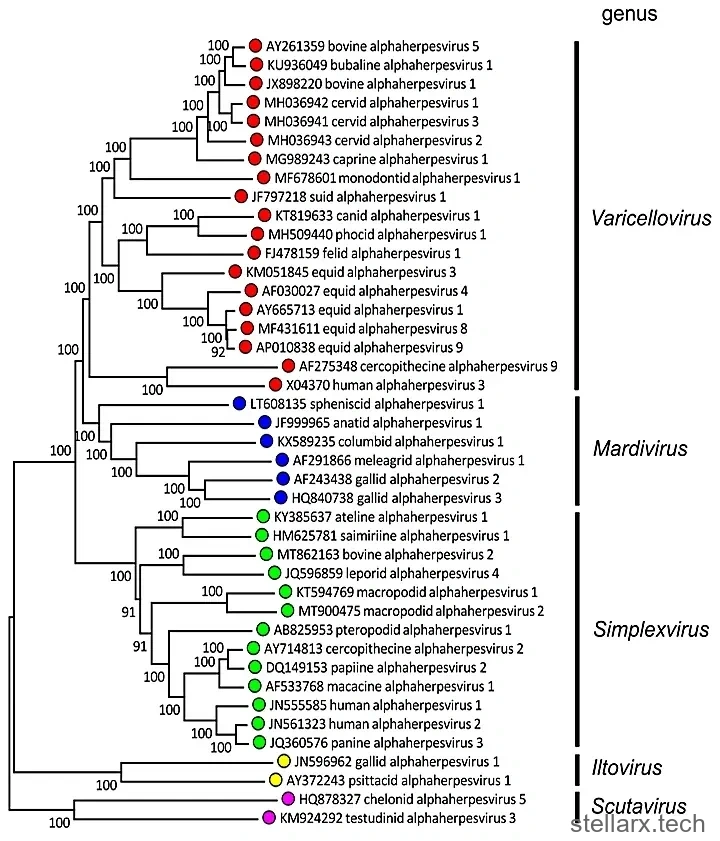
現生 α-皰疹病毒發生演化輻射的時間,可追溯至距今 113.8 - 140.6 Mya(早白堊世)。其 5 個屬中——除上面兩個,再加上馬立克病毒屬 Mardivirus、傳喉病毒屬 Iltovirus——這 4 個屬都有明確的神經嗜性,而甲盾病毒屬 Scutavirus 的很多種則似乎不是很明確。與此同時,Iltovirus 和 Scutavirus 是 α 亞科中最深的分支。
對於異皰疹病毒科和軟體類皰疹病毒科,雖然沒有解出結構,但 AlphaFold 預測顯示:小部分異皰疹病毒具有 Class I FP(與冠狀病毒的 S 蛋白關係較近,這很有意思,似乎是基因替換事件的結果),而絕大部分的皰疹病毒都採用 gpB 樣的 Class III FP。因此,目前已知的皰疹病毒自我們所知其存在以來,都主要使用 Class III FP。
結論:經過比對可以發現,皰疹病毒中典型的嗜神經性似乎最早出現於距今約 1 億年前,α-皰疹病毒亞科分支的早期。
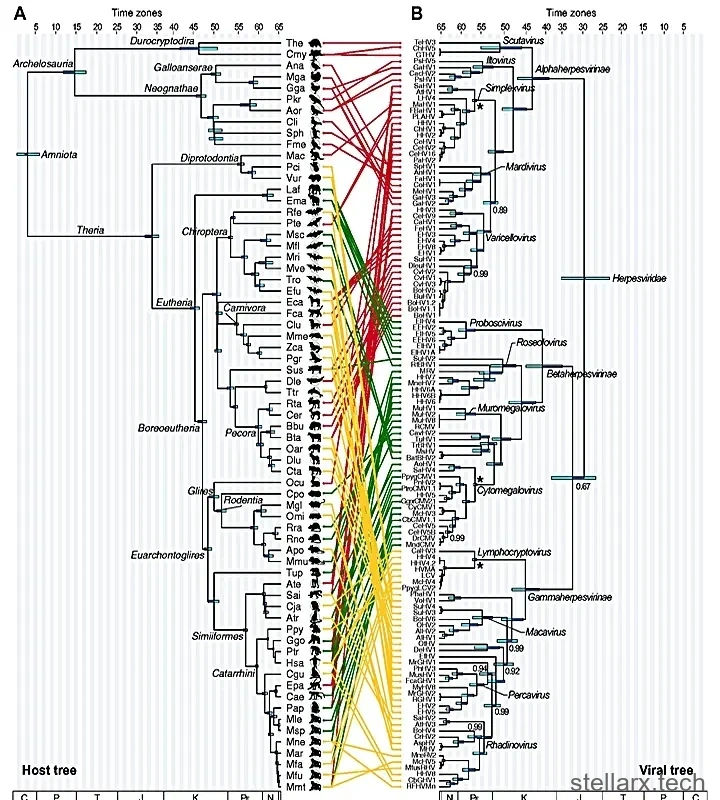
上圖把皰疹病毒和羊膜動物宿主放進同一把演化時鐘。把鏡頭拉近到 α-皰疹病毒亞科,下圖的屬級演化樹,能看到這個故事反覆提到的嗜神經譜系。
到底誰偷了誰
由於彈狀病毒的譜系比皰疹病毒豐富,甚至其近緣的博爾納病毒科——同樣擁有 Class III FP、同樣嚴格嗜神經——專性神經嗜性在負鏈 RNA 病毒中的演化,可能比皰疹病毒還要早。搞不好是反過來:皰疹病毒從彈狀病毒那裏「偷學」的也說不定。
那麼,負鏈 RNA 病毒中的 Class III FP / Class I FP 究竟從何而來,甚至 NNSV 在演化的道路上是如何獲得囊膜的呢?——很難回答。已知擁有 Class III FP 的病毒只有 3 組(還有一組是昆蟲桿狀病毒科 Baculoviridae,其部分成員擁有 Class I 的 F 以及 Class III 的 GP)——當然未來可能發現更多。這多樣性雖然很高,但由於演化樹的根部過度簡併,根本沒有樣本供演化學家做研究。
但無論如何,只攻擊神經的狂犬病毒,依然是我們觀察「病毒如何偷走彼此最危險的本事」最清晰的一扇窗——也提醒我們,要說清「這本事最初到底在誰手裏」,有多難。
想親眼看看神經組織長什麼樣嗎?WWAI 的虛擬顯微鏡裏有一個兔脊髓標本——中央蝴蝶形的灰質擠滿神經元,外圍白質纖維束清晰可見,中央管結構也在其中。在應用商店搜尋 WWAI 下載,隨時都能觀察。
Related reading


References
ICTV Report — Family: Qinviridae. https://ictv.global/report/chapter/qinviridae/qinviridae
ICTV Report — Family: Aspiviridae. https://ictv.global/report/chapter/aspiviridae/aspiviridae
ICTV Report — Family: Yueviridae. https://ictv.global/report/chapter/yueviridae/yueviridae
Mol Syst Biol. 2025;21(11):1599–1617.
Sci Adv. 2020;6(39):eabc1726.
ICTV Report — Family: Rhabdoviridae. https://ictv.global/report/chapter/rhabdoviridae/rhabdoviridae
Curr Biol. 2025;35(13):3278–3285.e5.
Virus Evol. 2021;7(1):veab025.
ICTV Report — Subfamily: Alphaherpesvirinae. https://ictv.global/report/chapter/orthoherpesviridae/orthoherpesviridae/alphaherpesvirinae
- 為什麼淡水沒有章魚?聰明如牠,也跨不過這道牆
- Can Octopus Live in Freshwater? Smart, Sea-Bound
- 狂犬病毒為何只攻擊神經?從皰疹病毒偷來的
- Why Rabies Virus Only Attacks Nerves
- 古代城市井水,為什麼又苦又鹹?
- Why Ancient City Well Water Turned Bitter
- 史上最忧郁的照片出现了……
- The Jinx Male Lead and the One-Episode Trap: Why AI Anime Reunions Are Breaking Hearts
- AI漫劇《酸梅陰天》引發追更焦慮:掃把星男主與斷章式推送成輿論焦點
- When AI Short Dramas Meet Campus Power: The Viral Rise of the 'Chaebol Classmate' Phenomenon
全部评论